Introdução
A Grande Mortandade ocorreu há 251,902 milhões de anos e é o que o registro rochoso tem de mais próximo de um reinício em escala planetária. Acima do limite, os calcários bioclásticos repletos de detritos de braquiópodes e restos de crinoides dão lugar a montículos microbianos dolomitizados e a folhelho preto de granulação fina. A diversidade de conodontes cai de forma abrupta, com a maioria dos gêneros paleozoicos desaparecendo ao longo de poucos centímetros de seção.
A Grande Mortandade, formalmente a extinção em massa do final do Permiano, que marca o limite Permiano-Triássico, eliminou mais vida marinha e terrestre do que qualquer outro evento do Fanerozoico.
Quando ocorreu a Grande Mortandade?
A seção de Meishan, no condado de Changxing, província de Zhejiang, fica numa pedreira abandonada, em um morro baixo a leste da vila. É a Seção e Ponto de Estratótipo Global oficial para a base do Triássico, ratificada pela União Internacional de Ciências Geológicas em 2001. O limite em si é definido bioestratigraficamente, posicionado na primeira aparição do conodonte Hindeodus parvus na camada 27c. Abaixo desse horizonte, a rocha guarda uma fauna paleozoica: foraminíferos fusulinídeos, braquiópodes produtídeos, corais rugosos, amonoides. Acima dele, os sobreviventes são um bestiário minguado de táxons de desastre.
Seis camadas de cinza vulcânica em Meishan foram datadas por espectrometria de massa de ionização térmica com diluição isotópica e abrasão química, em zircão. Shu-Zhong Shen e colegas calibraram a extinção em Meishan entre 251,941 e 251,880 Ma. Seth Burgess, trabalhando com Sam Bowring e Shu-Zhong Shen no MIT, refinou o limite para 251,902 ± 0,024 Ma, usando datações U-Pb em zircão de alta precisão de camadas de cinza de Meishan. Um estudo complementar correlacionou a cronologia de Meishan com zircões dos Traps Siberianos processados pela mesma química e pelo mesmo espectrômetro de massa, eliminando os vieses sistemáticos que haviam prejudicado comparações anteriores entre idades Ar-Ar nos basaltos e idades U-Pb nas seções de limite da China.
A precisão fecha a lacuna causal
Uma incerteza declarada de ±24 mil anos em uma data de 251,9 milhões de anos corresponde a um erro relativo de 0,01%. É a diferença entre saber que uma extinção ocorreu “por volta do limite Permiano-Triássico” e saber se ela ocorreu antes ou depois de um pulso específico de colocação de soleiras a 4.500 quilômetros de distância, na Sibéria. No tempo profundo, causalidade é um problema de geocronologia. Se os Traps Siberianos são posteriores à extinção, não a causaram. Se forem anteriores demais, a cadeia causal se dissolve em ruído. A cronologia de Burgess e Bowring situou o início do magmatismo siberiano volumoso cerca de 300.000 anos antes do começo da extinção marinha, com cerca de dois terços do volume total de magma colocados antes e durante o próprio intervalo de extinção.
A Pangeia antes da catástrofe
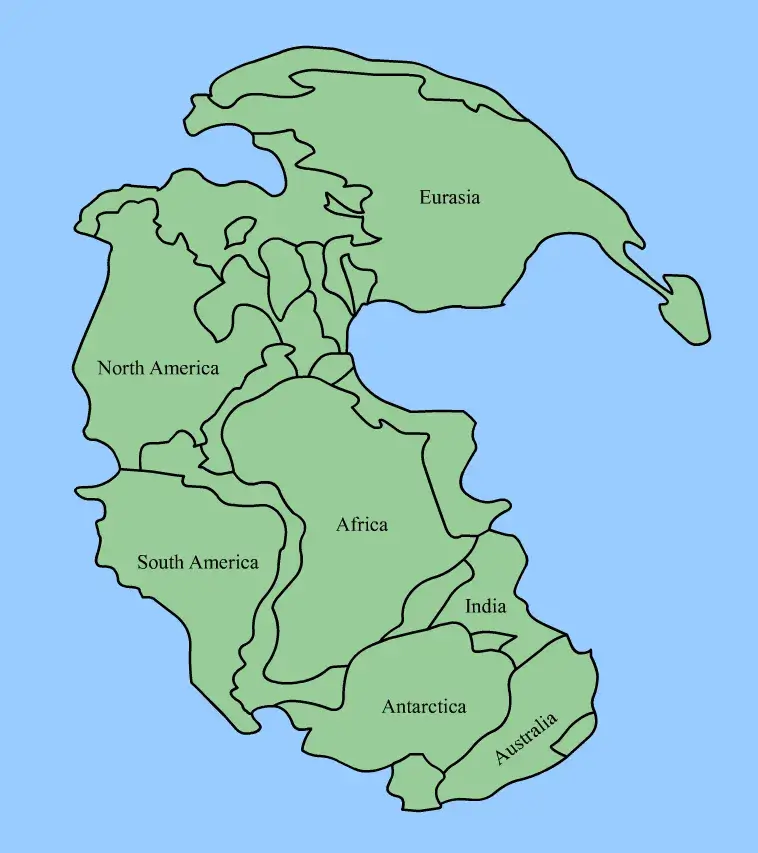
No Permiano tardio, todos os grandes blocos continentais haviam colidido num único supercontinente em forma de C. A Pangeia se estendia de polo a polo, com a cunha do oceano Tétis abrindo-se para leste em direção à Pantalassa, o superoceano global que cobria cerca de 70% da superfície do planeta. O interior era um deserto megacontinental. Monções sazonais varriam as costas. Pântanos de carvão da flora de Cathaysia persistiam nas ilhas do sul da China e da Indochina, e florestas de Glossopteris cobriam as latitudes gondwânicas do sul.
Os ecossistemas marinhos do final do Permiano eram biologicamente ricos, mas estruturalmente frágeis. Os recifes eram construídos por esponjas calcárias e associações de corais tabulados e rugosos, com Tubiphytes como um proeminente componente incrustante e aglutinante. As plataformas do Tétis, incluindo as plataformas carbonáticas hoje expostas nas Dolomitas do norte da Itália e no sul da China, sustentavam diversas comunidades de braquiópodes, briozoários e crinoides. Em terra, a Bacia do Karoo, no sul da África, preserva o registro mais completo de vertebrados. Os terapsídeos dicinodontes Dicynodon e Diictodon pastavam nas planícies de inundação; gorgonopsídeos como Inostrancevia e grandes terocefálios ocupavam a guilda dos predadores, enquanto os primeiros cinodontes, a linhagem que acabaria por originar os mamíferos, desempenhavam papéis menores nas mesmas associações.
O clima do Permiano tardio já estava esquentando. Registros de isótopos de oxigênio em conodontes das margens do Tétis mostram a temperatura da superfície do mar subindo desde o final do Changhsingiano até o início do Triássico. Yadong Sun e colegas, em um estudo de 2024 com múltiplos proxies e modelagem paleoclimática, usaram uma duplicação do CO₂ atmosférico, de cerca de 410 para 860 ppm ao longo do final do Permiano, como o cenário de forçamento mais consistente com os registros de temperatura obtidos por proxies. A circulação meridional de revolvimento enfraqueceu. A célula de Hadley se reorganizou, com seus ramos descendentes deslocando-se em direção aos polos. O forçamento climático já era substancial no final do Changhsingiano, antes de o magmatismo siberiano atingir seu pico.
Os Traps Siberianos
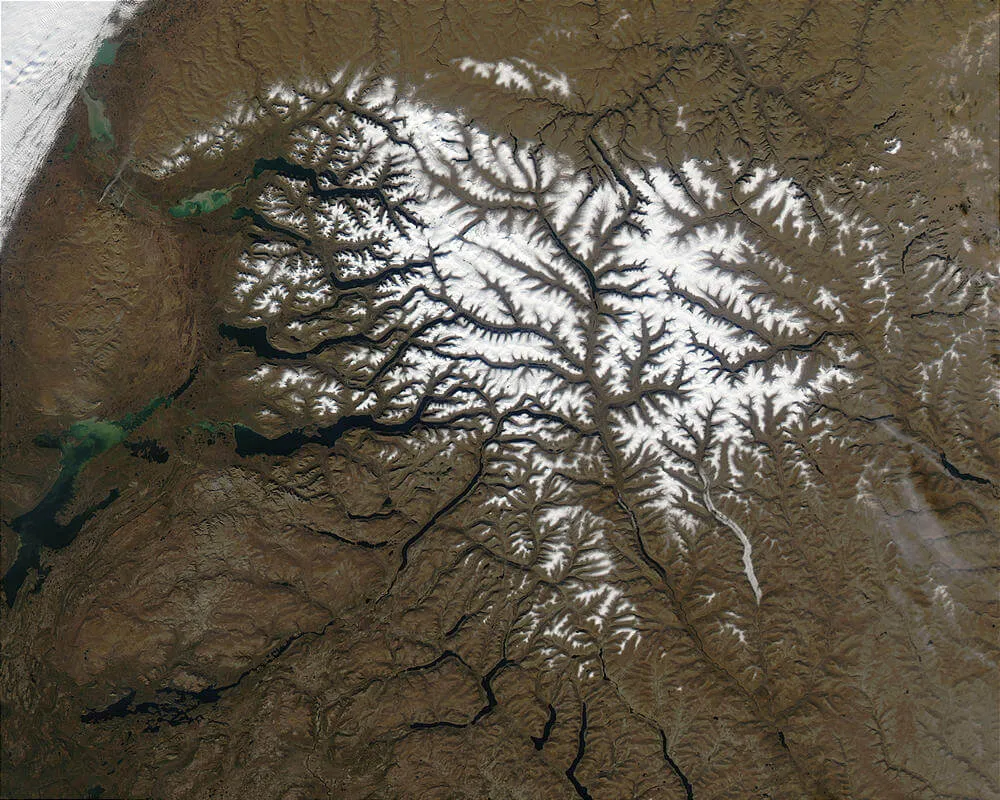
Ao norte do Círculo Polar Ártico, depois de Norilsk, o Planalto de Putorana se ergue em cristas de basalto preto-acinzentado, cortadas por cachoeiras que despencam por centenas de metros ao longo de escarpas em degraus. Cada degrau é um derrame de lava distinto. A região de Maymecha-Kotuy, a leste, expõe seções estratigráficas com mais de três quilômetros de espessura. Juntos, esses afloramentos, somados aos basaltos soterrados da Bacia da Sibéria Ocidental, mapeados por perfurações de hidrocarbonetos, definem a Grande Província Ígnea dos Traps Siberianos. A província originalmente cobria uma área estimada de 5–7 milhões de km², com os afloramentos hoje preservados mais próximos de 2–3 milhões de km² e um volume magmático preservado de cerca de 3–4 milhões de km³.
A erupção se desenrolou em fases. A datação U-Pb de alta precisão feita por Burgess e Bowring dividiu a atividade em fases. Os depósitos piroclásticos e vulcaniclásticos mais antigos, que formaram pilhas de cinzas de até um quilômetro de espessura em algumas áreas, começaram por volta de 252,24 Ma. Seguiram-se basaltos de inundação efusivos, com volumes prodigiosos de lava colocados em menos de um milhão de anos. Lars Augland e colegas, trabalhando com equipes de campo norueguesas e russas, usaram datações U-Pb em zircão de complexos intrusivos em Norilsk, Maymecha-Kotuy e Taimyr para mostrar que o pulso principal do magmatismo se estendeu, em área e em composição, muito além dos traps classicamente mapeados, com colocação síncrona ao longo de distâncias superiores a mil quilômetros.
A hipótese da pluma mantélica continua sendo a explicação padrão. Uma anomalia térmica profunda subiu pelo manto, atingiu a base do cráton siberiano e fundiu parcialmente o manto litosférico e astenosférico em escala continental. Os magmas resultantes aproveitaram fraquezas preexistentes da crosta. Onde chegaram à superfície, entraram em erupção como cortinas basálticas a partir de fissuras com centenas de quilômetros de comprimento. Onde estagnaram na crosta superior, espalharam-se lateralmente como soleiras.
Por que os Traps Siberianos foram tão letais
Pelo volume total de magma, os Traps Siberianos não são excepcionais. O Platô oceânico de Ontong Java os eclipsa; a Província Magmática do Atlântico Central, do final do Triássico, era comparável em escala continental. O que torna distinto o evento siberiano é o local onde ele entrou em erupção. A província repousa sobre a Bacia de Tunguska: carvões do Carbonífero-Permiano, evaporitos do Cambriano e do Devoniano, incluindo halita e anidrita estratificadas, e folhelhos ricos em matéria orgânica, quilômetros de carbono e enxofre à espera de serem cozidos.
Soleiras, carvão e a bomba de gás da Bacia de Tunguska
Henrik Svensen e colegas da Universidade de Oslo, trabalhando ao longo do final da década de 2000, mapearam mais de 6.000 complexos de respiradouros hidrotermais que perfuram os sedimentos da Bacia de Tunguska. Os dutos são condutos aproximadamente cilíndricos, com centenas de metros de diâmetro e até um quilômetro de altura, preenchidos por rocha encaixante brechada e revestidos por associações minerais metamórficas de contato e hidrotermais. Cada duto registra a liberação explosiva de gás produzido quando uma soleira ascendente cozinhou as rochas sedimentares que ela intrudiu. A datação U-Pb de zircões em um desses dutos situou essa liberação em 252,0 ± 0,4 Ma, coincidente com a extinção marinha em Meishan.
Aquecer os carvões da Bacia de Tunguska a temperaturas magmáticas libera metano e CO₂ em escalas enormes. Aquecer os evaporitos de halita e anidrita subjacentes faz algo mais peculiar. Experimentos de laboratório do grupo de Svensen com sal-gema impregnado de petróleo da Sibéria mostraram que, quando evaporitos naturais são aquecidos a cerca de 275 °C, eles liberam cloreto de metila e brometo de metila. São halocarbonetos com potencial de destruição da camada de ozônio comparável ao dos CFCs industriais, ou maior que ele.
Seth Burgess revisitou a cronologia do magmatismo em 2017 e propôs uma hipótese mais precisa. A fase mais antiga do magmatismo siberiano, dominada por lavas de superfície, precedeu a extinção em várias centenas de milhares de anos e não desestabilizou, por si só, a biosfera. A crise começou quando o sistema de alimentação magmática mudou. Por volta do início da extinção, o estilo dominante de colocação passou abruptamente de lavas de inundação extrusivas para soleiras intrusivas. As soleiras, ao contrário dos derrames de superfície, intrudem diretamente rochas hospedeiras sedimentares. Cada soleira se torna uma auréola térmica gigante. Burgess, James Muirhead e Bowring argumentaram que esse pulso inicial de soleiras lateralmente extensas cozinhou vastos volumes de sedimento antes intocado e fértil em voláteis, liberando os voláteis de carbono e enxofre que desencadearam a mortandade.
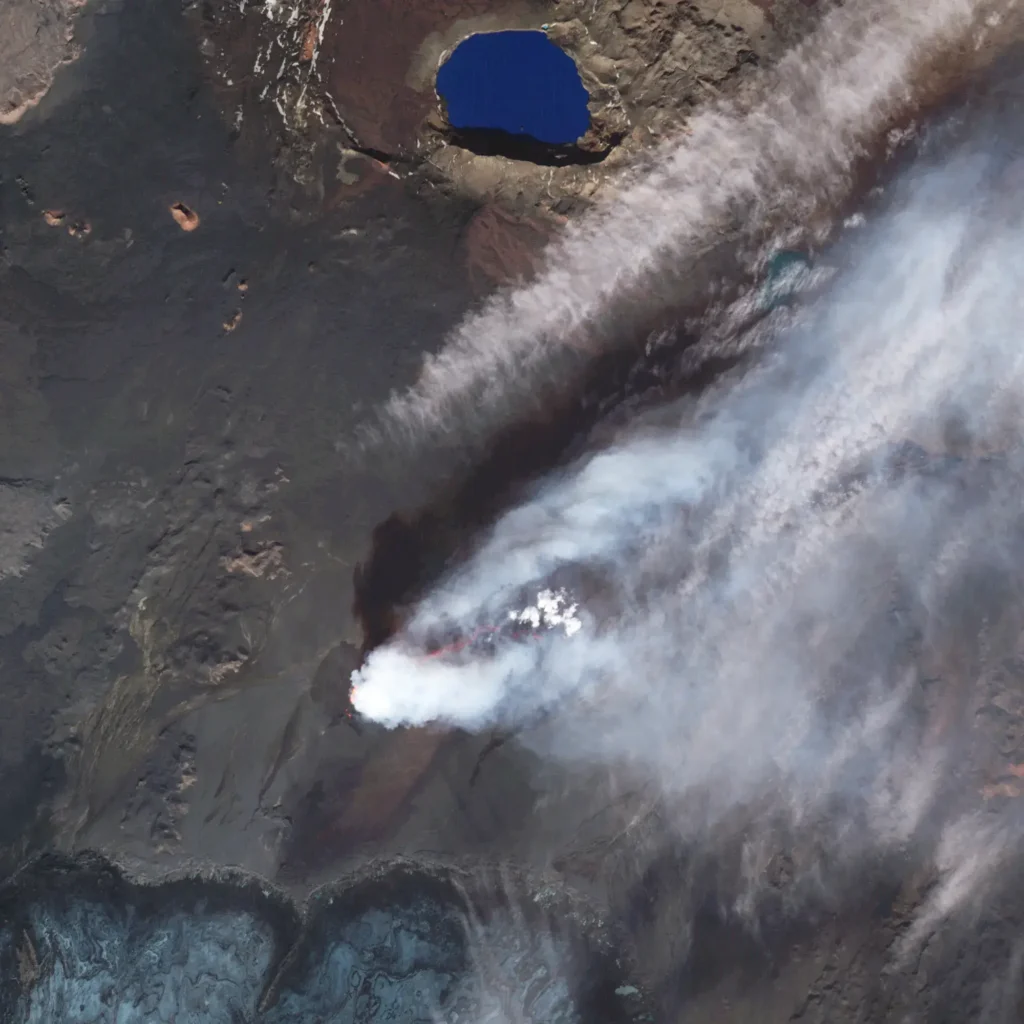
A geoquímica passou a corroborar esse quadro. Ying Cui e colaboradores usaram registros de isótopos de carbono em rocha total e um modelo do sistema Terra para estimar a magnitude e a taxa de emissão de carbono ao longo do limite. Seu cenário de melhor ajuste exigia uma liberação da ordem de dezenas de milhares de gigatoneladas de carbono, com taxas de pico de várias Gt C ano⁻¹, e com uma assinatura isotópica compatível com uma fonte predominantemente vulcânica e metamórfica de contato, e não com um gatilho de clatratos de metano. Anomalias de mercúrio em sedimentos marinhos contam a mesma história. Jun Shen e colegas mediram concentrações e isótopos de mercúrio ao longo do limite Permiano-Triássico em dez seções marinhas distribuídas pelo Hemisfério Norte e pelo Tétis. Encontraram picos de Hg coincidentes com a extinção em seções de águas rasas, enquanto seções de águas profundas registraram anomalias de Hg dezenas de milhares de anos antes, indicando que o vulcanismo já carregava a atmosfera antes de o colapso biótico se tornar inequívoco nas associações de plataforma.
Stephen Grasby e colegas encontraram uma linha de evidência ainda mais perturbadora em sedimentos da Bacia de Sverdrup, no Alto Ártico canadense: camadas de esférulas carbonosas indistinguíveis, ao microscópio, das cinzas volantes de carvão modernas, o resíduo de carvão pulverizado queimado a altas temperaturas. A interpretação deles foi que erupções térmicas através dos carvões de Tunguska lançaram cinzas ao ar em escala global, dispersando material particulado tóxico sobre os oceanos e fornecendo ainda mais metais às águas superficiais exatamente quando a biosfera marinha começava a falhar.
Como um mega El Niño matou os oceanos
O forçamento por CO₂ sozinho não explica a escala da mortandade. O mecanismo que liga o fluxo de carbono à perda de 81% das espécies marinhas é climático e dinâmico, atuando por meio da circulação oceânica, da célula de Hadley e da variabilidade do Pacífico tropical. Um estudo de 2024 na Science, de Yadong Sun, Alexander Farnsworth, Michael Joachimski, Paul Wignall, Leopold Krystyn, David Bond, Domenico Ravidà e Paul Valdes, propôs o que talvez seja a reconstrução mais convincente até agora. Sua abordagem integrada, de isótopos e modelagem paleoclimática, mostrou que, à medida que o CO₂ dobrava no final do Permiano, o gradiente de temperatura entre o equador e os polos colapsava, a circulação meridional de revolvimento enfraquecia, a célula de Hadley se contraía e o El Niño–Oscilação Sul (ENOS) se tornava patológico.
Em sua reconstrução, cada evento durava cerca de uma década, muito além de qualquer coisa no registro moderno do ENOS, com anomalias de temperatura da superfície do mar no Pacífico tropical grandes o bastante para redesenhar o mapa de chuvas da Pangeia. Os intervalos de seca se prolongavam por tempo demais para que espécies arbóreas sobrevivessem entre as fases úmidas. Nos oceanos, a ausência de gradientes meridionais e a desaceleração do revolvimento privaram as águas profundas de oxigênio e, ao mesmo tempo, empurraram as temperaturas da superfície para além das tolerâncias térmicas do plâncton. A retroalimentação se agravou: florestas moribundas deixaram de sequestrar carbono, deixando mais CO₂ na atmosfera; mais CO₂ produzia oscilações do ENOS ainda mais intensas; oscilações mais intensas do ENOS matavam mais biomassa.
A extinção do final do Permiano no domínio marinho não se distribuiu de maneira uniforme entre as latitudes. Os táxons tropicais sofreram, mas a severidade da extinção foi maior em latitudes médias e altas para muitos grupos marinhos. Justin Penn, Curtis Deutsch, Jonathan Payne e Erik Sperling, em um artigo de 2018 na Science, modelaram o oceano do Permiano-Triássico usando uma estrutura acoplada de clima e ecofisiologia. Eles calcularam um Índice Metabólico para táxons animais representativos: a razão entre a oferta e a demanda de oxigênio de um dado organismo a uma dada temperatura. O modelo reproduziu a geografia observada da extinção porque as altas latitudes perderam seus refúgios frios e ricos em oxigênio. As espécies tropicais podiam se deslocar em direção aos polos à medida que os trópicos esquentavam; as espécies de altas latitudes não tinham mais para onde ir.
Anoxia em profundidade, hipercapnia na superfície
Os registros de framboides de pirita, os isótopos de urânio e a geoquímica de elementos-traço sensíveis a condições redox convergem para um único quadro do oceano do final do Permiano. As águas de fundo em vastas áreas de plataforma do Tétis e da Pantalassa tornaram-se anóxicas ou até euxínicas, com sulfeto de hidrogênio livre. A quimioclina ficou mais rasa. A euxinia na zona fótica, registrada por biomarcadores como o isorenieratano, derivado de bactérias verdes do enxofre, alcançou episodicamente o oceano de superfície em algumas seções. A combinação de aquecimento, desoxigenação e acúmulo de sulfeto era uma morsa fisiológica.
A curva de mortandade marinha: anoxia, hipercapnia, acidificação
O número de manchete da extinção mudou ao longo das últimas duas décadas. Sínteses mais antigas, incluindo a muito citada perda de 96% das espécies marinhas, baseavam-se em análises de rarefação com vieses amostrais substanciais. Estimativas de consenso mais recentes, incluindo as extraídas do Paleobiology Database e de sínteses regionais de Steven Stanley e Shu-Zhong Shen, situam a perda de espécies marinhas em cerca de 81%, com a perda em nível de gênero mais próxima de 56%. A formulação “Grande Mortandade” continua precisa; o percentual exato muda à medida que os bancos de dados de fósseis melhoram.
A curva de mortandade se distribui de modo desigual entre os grupos taxonômicos. Os organismos fortemente calcificantes, com capacidade fisiológica limitada de tamponamento, sofreram mais. Os corais rugosos e tabulados foram extintos por completo. Os foraminíferos fusulinídeos e os trilobitas desapareceram. Os braquiópodes articulados, que haviam dominado as comunidades bentônicas de plataforma por 250 milhões de anos, perderam a maior parte de sua diversidade. Os moluscos atravessaram a crise com perdas pesadas, mas com sobreviventes suficientes para semear o Mesozoico. Conodontes, amonoides e um punhado de linhagens de foraminíferos forneceram a espinha dorsal bioestratigráfica para correlacionar seções do Triássico mais inicial.
Hana Jurikova e colegas do GEOMAR, em Kiel, quantificaram a acidificação oceânica ao longo do limite usando isótopos de boro em conchas de braquiópodes do Permiano tardio dos Alpes Meridionais. As conchas, depositadas na plataforma do Tétis do que hoje é o norte da Itália, registraram uma queda substancial do pH da água do mar coincidente com o início da extinção em massa. Combinado com dados de isótopos de carbono e inserido em um modelo geoquímico, o registro de boro resolveu pelo menos dois pulsos distintos de acidificação. O pulso inicial, ligado à rápida liberação de carbono pelas intrusões de soleiras siberianas, foi intenso o bastante para fazer o estado de saturação de carbonato das águas superficiais despencar em poucos milhares de anos.
Para os animais com concha, a acidificação significava custos metabólicos elevados de biomineralização. Para animais que já lidavam com temperaturas elevadas e menos oxigênio, a carga adicional da hipercapnia (CO₂ elevado no sangue) levou muitas fisiologias além de suas tolerâncias. Jonathan Payne e Lee Kump argumentaram anos antes que o padrão de seletividade da extinção do final do Permiano no domínio marinho acompanhava de perto a capacidade fisiológica dos táxons de tamponar a química ácido-base interna. Foster e colegas, em um estudo paleobiológico de 2022, usaram aprendizado de máquina em um grande conjunto de dados de fósseis marinhos e constataram que características ecológicas associadas a limitações metabólicas e respiratórias previam o risco de extinção melhor do que a afiliação taxonômica.
Benjamin Black, trabalhando com Linda Elkins-Tanton, Erik Hauri e Steven Brown, examinou razões de isótopos de enxofre em inclusões magmáticas aprisionadas em minerais dos Traps Siberianos para estimar as emissões de enxofre do sistema vulcânico. Eles concluíram que os magmas carregavam substancialmente mais enxofre do que os basaltos derivados do manto costumam carregar, com assinaturas isotópicas que apontam para sulfato derivado de evaporitos como fonte extra. Quando esse enxofre foi injetado na estratosfera, formou aerossóis de sulfato que dispersaram a luz solar e produziram episódios de resfriamento regional. Quando voltou à superfície, produziu precipitação ácida em todo o Hemisfério Norte. Black, Jean-François Lamarque e colegas modelaram a química atmosférica da desgaseificação pulsada dos Traps Siberianos e constataram que a chuva simulada atingia valores de pH comparáveis ao do suco de limão puro sobre a região da erupção, com episódios de destruição global de ozônio impulsionados por voláteis contendo halogênios.
O colapso terrestre e a Terra do Lystrosaurus
Em terra, a extinção do final do Permiano é lida com mais clareza na Bacia do Karoo, na África do Sul. O Grupo Beaufort, no Karoo, preserva uma sucessão de planície de inundação quase contínua, do Permiano tardio ao início do Triássico. A bioestratigrafia de vertebrados divide esse intervalo em zonas de associação nomeadas a partir de seus gêneros característicos. A Zona de Associação de Daptocephalus, de idade Changhsingiano tardio, é dominada por grandes dicinodontes e por uma guilda diversificada de predadores gorgonopsídeos. Acima dela, na Zona de Associação de Lystrosaurus, a fauna se reduz a um punhado de táxons, com o dicinodonte do tamanho de um porco Lystrosaurus respondendo por até 95% dos espécimes identificáveis em alguns leitos ósseos.
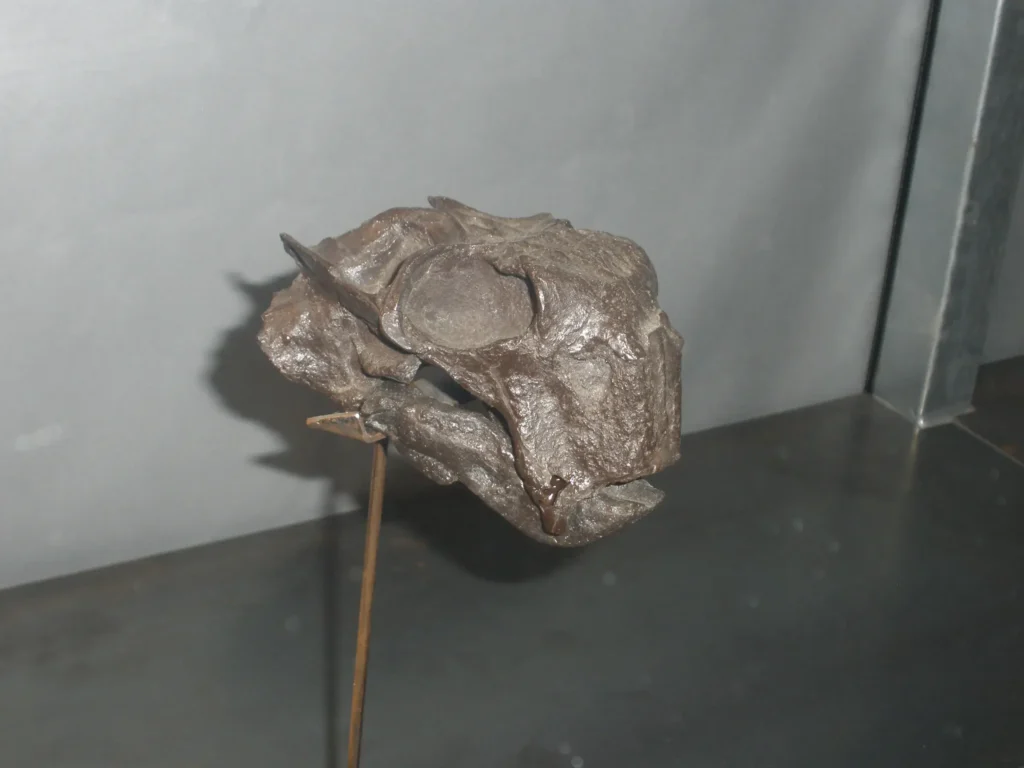
Lystrosaurus é o táxon de desastre por excelência. Escavador, oportunista e fisiologicamente tolerante a pouco oxigênio e a CO₂ elevado, espalhou-se pela Pangeia no início do Triássico com extraordinária eficiência. Seus fósseis foram recuperados na Antártida, na Índia, na China, na Rússia europeia e na África do Sul, o que indica uma distribuição quase cosmopolita. Os espécimes antárticos, recuperados pela equipe de Edwin Colbert em Coalsack Bluff, em 1969, tornaram-se uma das confirmações paleontológicas mais citadas da deriva continental. As planícies de inundação do Karoo após a extinção são, em essência, uma monocultura de Lystrosaurus, povoada por alguns pequenos anfíbios temnospôndilos e pelos sobreviventes terocefálios e cinodontes primitivos que acabariam se irradiando nas linhagens de sinápsidos do Mesozoico.
O registro de plantas é mais matizado. Cindy Looy e colegas documentaram o colapso das florestas dominadas por Glossopteris no sul da Pangeia e das florestas tropicais de Cathaysia na faixa equatorial. Associações palinológicas ao longo do limite mostram a substituição abrupta de gimnospermas produtoras de pólen por esporos de licófitas e samambaias, o clássico “pico de samambaias” que marca paisagens pós-perturbação. A erosão do solo aumentou de forma acentuada, registrada em paleossolos ricos em caulinita e em depósitos aluviais incomuns, de granulação grossa, em várias bacias. A deposição de carvão cessou, em essência, em escala global por vários milhões de anos, o “hiato de carvão do Triássico Inicial”.
As extinções em terra e no mar ocorreram ao mesmo tempo?
Uma das mudanças mais importantes em nossa compreensão da Grande Mortandade veio de um artigo de 2024 de Qiong Wu e colegas na Science Advances. Trabalhando em seções terrestres do Permiano-Triássico no sul e no norte da China, eles aplicaram datação U-Pb em zircão de alta precisão a camadas de cinza ligadas diretamente a horizontes fossilíferos. O resultado: a principal extinção terrestre do final do Permiano nos paleotrópicos foi posterior ao início da extinção marinha em dezenas de milhares de anos. A suposição clássica de um colapso global sincrônico, com terra e mar morrendo juntos, não se sustenta na faixa equatorial.
Essa diacronia se encaixa no modelo do mega El Niño. Sun e colegas argumentaram que a assinatura do mega El Niño, com suas plumas de calor tropicais e a aridificação continental, matou plantas e animais terrestres de forma progressiva, à medida que os intervalos de seca ultrapassavam os limiares de sobrevivência. Os ecossistemas marinhos foram inicialmente amortecidos pela inércia térmica do oceano e por reservatórios frios profundos, sucumbindo apenas quando o aquecimento, a desoxigenação e a acidificação se acumularam ao longo das dezenas de milhares de anos seguintes. O registro de vertebrados do Karoo, estudado por Roger Smith, Jennifer Botha-Brink e Pia Viglietti, mostra um colapso em etapas, e não um único horizonte, com os predadores gorgonopsídeos dominantes desaparecendo antes da base de presas dicinodontes.
O que causou a extinção do final do Permiano?
As evidências convergem de seis direções independentes. Datações U-Pb em soleiras siberianas e em camadas de cinza de Meishan, feitas no mesmo laboratório, situam a intrusão inicial das soleiras cerca de 300 mil anos antes do início da extinção marinha, com o estilo dominante de colocação do magma mudando de lavas extrusivas para soleiras intrusivas no próprio limite. Isótopos de boro de braquiópodes da margem do Tétis registram pulsos de acidificação sincrônicos com essa mudança de colocação. Anomalias de mercúrio em sedimentos marinhos do mundo todo disparam no mesmo horizonte. Excursões de isótopos de carbono, modeladas por Cui e colegas, exigem uma liberação de cerca de 36.000 Gt de carbono com assinatura isotópica vulcânica, a taxas próximas de 5 Gt C ano⁻¹. Isótopos de enxofre de inclusões magmáticas siberianas mostram forte carga de sulfato derivado de evaporitos. Resíduos de cinzas volantes de carvão em sedimentos do Ártico canadense registram a combustão dos carvões de Tunguska em escala continental.
Cada linha de evidência se apoia nas demais. Uma pluma mantélica sobe sob o cráton siberiano. Soleiras intrudem um pacote sedimentar carregado de carvão, evaporitos e folhelho orgânico. A atmosfera recebe CO₂, metano, haletos de metila e aerossóis de sulfato. Seguem-se aquecimento, acidificação e uma dinâmica descontrolada do ENOS. As comunidades marinhas e terrestres entram em colapso.
Para comparação, as emissões antropogênicas modernas de carbono estão na faixa de cerca de 10 Gt C ano⁻¹, o dobro da taxa de pico que Cui e colegas estimaram para o final do Permiano. O orçamento cumulativo total da desgaseificação dos Traps Siberianos excede qualquer coisa que os humanos poderiam plausivelmente emitir queimando todas as reservas conhecidas de combustíveis fósseis. As emissões humanas não vão reproduzir o orçamento dos Traps Siberianos. O que o registro rochoso alerta é a taxa, as retroalimentações que se acionam quando o sistema de carbono de um planeta é perturbado mais depressa do que seus tampões conseguem responder.
A recuperação e por que ela levou 10 milhões de anos
O oceano do início do Triássico era um lugar estranho. As plataformas carbonáticas do sul da China e do Irã são dominadas por microbialitos: texturas carbonáticas laminadas e coaguladas, produzidas por esteiras de cianobactérias. São típicas dos mares do Pré-Cambriano, antes de os animais pastadores manterem suprimidas as comunidades microbianas nas plataformas rasas. Logo após a extinção, sem pastadores nem construtores de recifes, os microbialitos voltaram como a principal fábrica de carbonato marinho. As associações de bivalves eram monótonas, dominadas por alguns gêneros oportunistas como Claraia e Eumorphotis. A diversidade de amonoides, que havia desabado ao longo do limite, se recuperou numericamente em um milhão de anos, mas permaneceu ecologicamente estreita por muito mais tempo.
As temperaturas da superfície do oceano, reconstruídas por Joachimski e outros a partir de isótopos de oxigênio em apatita de conodontes, permaneceram extraordinariamente altas durante o início do Triássico. As temperaturas tropicais da superfície do mar chegaram perto de 40 °C no Smithiano (Sun et al., 2012, Science), condições que excluíram por completo a maioria dos grandes peixes e dos tetrápodes dos oceanos equatoriais. A “zona morta tropical” do Triássico Inicial durou vários milhões de anos, até que as temperaturas amenizassem o bastante para permitir que comunidades marinhas diversificadas reocupassem as baixas latitudes.
Registros de mercúrio compilados por Shen e colegas em várias seções mostram que o magmatismo dos Traps Siberianos continuou em pulsos bem adentro do Triássico Inicial, com pelo menos dois eventos distintos pós-extinção. Cada pulso parece ter prolongado ou reiniciado a recuperação. A anoxia voltou. As curvas de isótopos de carbono oscilaram violentamente durante o início do Triássico, indicando uma perturbação sustentada do ciclo global do carbono. A cronologia Burgess–Bowring mostra que o vulcanismo de superfície continuou por pelo menos mais 500.000 anos após o fim da extinção, e o volume de magma pós-extinção rivalizou com o do período anterior.
Ecossistemas recifais complexos só reapareceram no Triássico Médio, cerca de 7 a 10 milhões de anos após o limite Permiano-Triássico, com a ascensão dos corais escleractínios substituindo a guilda extinta de rugosos e tabulados. O intervalo de recuperação representa o mais longo hiato desse tipo no Fanerozoico, mais longo que a recuperação de qualquer outra extinção em massa. A recuperação do evento de Chicxulub, do final do Cretáceo, em comparação, estava em grande parte concluída em poucos milhões de anos para a maioria dos grupos marinhos e terrestres.
O que o limite Permiano-Triássico nos diz sobre o clima moderno
O limite Permiano-Triássico aparece hoje em capítulos do IPCC sobre a resposta dos ecossistemas oceânicos. Os cientistas do clima o leem como o exemplo mais limpo do registro rochoso de um planeta levado ao colapso por uma perturbação do ciclo do carbono: CO₂ alto, pouco oxigênio, pH baixo e calor.
Penn, Deutsch, Payne e Sperling enquadraram seu trabalho sobre hipóxia dependente da temperatura nas tendências modernas de desoxigenação dos oceanos. Pesquisadores comparam diretamente o registro de isótopos de boro de braquiópodes do Tétis, de Jurikova, com reconstruções modernas de pH por isótopos de boro em esqueletos de corais. As taxas de emissão de carbono de Cui aparecem na literatura de políticas públicas ao lado dos números contemporâneos de combustíveis fósseis.
Os números não correspondem de forma limpa aos de hoje. Os Traps Siberianos liberaram seu carbono ao longo de centenas de milhares de anos, com um orçamento cumulativo que nenhum cenário humano de combustíveis fósseis poderia alcançar. A Pangeia acabou. As massas de gelo polar que amortecem o aquecimento moderno não existiam. Nenhuma pluma mantélica emergiu sob uma bacia de carvão e evaporitos em nosso hemisfério.
O que corresponde é a taxa. As emissões antropogênicas estão em cerca do dobro da taxa de pico que Cui estimou para o evento siberiano. O registro Permiano-Triássico mostra o que acontece quando a química do oceano é perturbada mais depressa do que seus tampões respondem.
O que ainda não sabemos sobre a extinção do Permiano-Triássico
Algumas peças da história da extinção do final do Permiano continuam sem solução. O papel da desestabilização de clatratos de metano é discutido de um lado e de outro há duas décadas; a análise de isótopos de Cui desfavorece uma contribuição importante de clatratos, embora não exclua uma participação. A importância relativa da anoxia marinha, do envenenamento por sulfeto de hidrogênio e do aquecimento como mecanismos de mortandade marinha continua a ser debatida táxon por táxon. A extinção terrestre em altas latitudes do sul, em lugares como a Bacia de Sydney, na Austrália, e a Bacia de Bowen, parece ter começado ainda antes dos eventos do Karoo e da China, sugerindo que o colapso terrestre global foi diacrônico nos dois sentidos.
As campanhas de campo continuam. Novas seções do limite Permiano-Triássico estão sendo medidas no Ártico canadense, no Irã, na Turquia, em Omã e nas seções de oceano profundo da Pantalassa preservadas como blocos acrescionados no Japão. Cada uma acrescenta uma dimensão regional à história global. A fina camada de argila de Meishan continua sendo o espécime-tipo, a pedra de Roseta com a qual tudo o mais é calibrado. Mas ela já não é a única rocha que importa.
O limite em Meishan é uma faixa fina e pálida de cinza vulcânica alterada, o tipo de coisa por que você passaria direto numa encosta sem notar. Ele registra a conversão de uma biosfera paleozoica de trilobitas, plataformas dominadas por braquiópodes e florestas de Glossopteris em um palco mesozoico despovoado, no qual o Lystrosaurus fuçava pelas planícies de inundação e os microbialitos cresciam sobre os destroços dos recifes. A fase de mortandade durou da ordem de 60.000 anos. A recuperação levou dez milhões.
Perguntas frequentes
Quando ocorreu a Grande Mortandade? Há 251,902 ± 0,024 milhões de anos, no limite entre os períodos Permiano e Triássico.
O que causou a extinção em massa do final do Permiano? A Grande Província Ígnea dos Traps Siberianos, em particular a intrusão de soleiras de magma em carvão, evaporitos e folhelhos ricos em matéria orgânica da Bacia de Tunguska, que liberou cerca de 36.000 gigatoneladas de carbono, além de enxofre, halocarbonetos e metais tóxicos.
Quantas espécies foram extintas? Aproximadamente 81% das espécies marinhas e 56% dos gêneros marinhos. As perdas terrestres são mais difíceis de quantificar, mas tiveram severidade comparável.
Quanto tempo durou a extinção? A fase de mortandade levou cerca de 60.000 anos. O gatilho magmático se estendeu por cerca de 300.000 anos antes de a extinção marinha começar. A recuperação completa dos ecossistemas exigiu de 7 a 10 milhões de anos.
Referências
- Burgess, S.D. & Bowring, S.A. (2015). High-precision geochronology confirms voluminous magmatism before, during, and after Earth’s most severe extinction. Science Advances, 1(7): e1500470. https://doi.org/10.1126/sciadv.1500470
- Burgess, S.D., Muirhead, J.D. & Bowring, S.A. (2017). Initial pulse of Siberian Traps sills as the trigger of the end-Permian mass extinction. Nature Communications, 8: 164. https://doi.org/10.1038/s41467-017-00083-9
- Sun, Y., Farnsworth, A., Joachimski, M.M., Wignall, P.B., Krystyn, L., Bond, D.P.G., Ravidà, D.C.G. & Valdes, P.J. (2024). Mega El Niño instigated the end-Permian mass extinction. Science, 385(6714): 1189–1195. https://doi.org/10.1126/science.ado2030
- Wu, Q., Zhang, H., Ramezani, J., Zhang, F.-F., Erwin, D.H., Feng, Z., Shao, L.-Y., Cai, Y.-F., Zhang, S.-H., Xu, Y.-G. & Shen, S.-Z. (2024). The terrestrial end-Permian mass extinction in the paleotropics postdates the marine extinction. Science Advances, 10(5): eadi7284. https://doi.org/10.1126/sciadv.adi7284
- Shen, S.-Z., Crowley, J.L., Wang, Y., Bowring, S.A., Erwin, D.H., Sadler, P.M., Cao, C.-Q., Rothman, D.H., Henderson, C.M., Ramezani, J., Zhang, H., Shen, Y., Wang, X.-D., Wang, W., Mu, L., Li, W.-Z., Tang, Y.-G., Liu, X.-L., Liu, L.-J., Zeng, Y., Jiang, Y.-F. & Jin, Y.-G. (2011). Calibrating the end-Permian mass extinction. Science, 334(6061): 1367–1372. https://doi.org/10.1126/science.1213454
- Bowring, S.A., Erwin, D.H., Jin, Y.G., Martin, M.W., Davidek, K. & Wang, W. (1998). U/Pb zircon geochronology and tempo of the end-Permian mass extinction. Science, 280(5366): 1039–1045. https://doi.org/10.1126/science.280.5366.1039
- Cui, Y., Li, M., van Soelen, E.E., Peterse, F. & Kürschner, W.M. (2021). Massive and rapid predominantly volcanic CO₂ emission during the end-Permian mass extinction. Proceedings of the National Academy of Sciences, 118(37): e2014701118. https://doi.org/10.1073/pnas.2014701118
- Penn, J.L., Deutsch, C., Payne, J.L. & Sperling, E.A. (2018). Temperature-dependent hypoxia explains biogeography and severity of end-Permian marine mass extinction. Science, 362(6419): eaat1327. https://doi.org/10.1126/science.aat1327
- Black, B.A., Lamarque, J.-F., Shields, C.A., Elkins-Tanton, L.T. & Kiehl, J.T. (2014). Acid rain and ozone depletion from pulsed Siberian Traps magmatism. Geology, 42(1): 67–70. https://doi.org/10.1130/G34875.1
- Svensen, H., Planke, S., Polozov, A.G., Schmidbauer, N., Corfu, F., Podladchikov, Y.Y. & Jamtveit, B. (2009). Siberian gas venting and the end-Permian environmental crisis. Earth and Planetary Science Letters, 277(3–4): 490–500. https://doi.org/10.1016/j.epsl.2008.11.015
- Grasby, S.E., Sanei, H. & Beauchamp, B. (2011). Catastrophic dispersion of coal fly ash into oceans during the latest Permian extinction. Nature Geoscience, 4: 104–107. https://doi.org/10.1038/ngeo1069
- Shen, J., Chen, J., Algeo, T.J., Yuan, S., Feng, Q., Yu, J., Zhou, L., O’Connell, B. & Planavsky, N.J. (2019). Evidence for a prolonged Permian-Triassic extinction interval from global marine mercury records. Nature Communications, 10: 1563. https://doi.org/10.1038/s41467-019-09620-0
- Jurikova, H., Gutjahr, M., Wallmann, K., Flögel, S., Liebetrau, V., Posenato, R., Angiolini, L., Garbelli, C., Brand, U., Wiedenbeck, M. & Eisenhauer, A. (2020). Permian–Triassic mass extinction pulses driven by major marine carbon cycle perturbations. Nature Geoscience, 13: 745–750. https://doi.org/10.1038/s41561-020-00646-4
- Black, B.A., Hauri, E.H., Elkins-Tanton, L.T. & Brown, S.M. (2014). Sulfur isotopic evidence for sources of volatiles in Siberian Traps magmas. Earth and Planetary Science Letters, 394: 58–69. https://doi.org/10.1016/j.epsl.2014.02.057
- Erwin, D.H. (2006). Extinction: How Life on Earth Nearly Ended 250 Million Years Ago. Princeton University Press, Princeton, NJ.
- Foster, W.J., Ayzel, G., Münchmeyer, J., Rettelbach, T., Kitzmann, N.H., Isson, T.T., Mutti, M. & Aberhan, M. (2022). Machine learning identifies ecological selectivity patterns across the end-Permian mass extinction. Paleobiology, 48(3): 357–371. https://doi.org/10.1017/pab.2022.1
- Augland, L.E., Ryabov, V.V., Vernikovsky, V.A., Planke, S., Polozov, A.G., Callegaro, S., Jerram, D.A. & Svensen, H.H. (2019). The main pulse of the Siberian Traps expanded in size and composition. Scientific Reports, 9: 18723. https://doi.org/10.1038/s41598-019-54023-2