Introducción
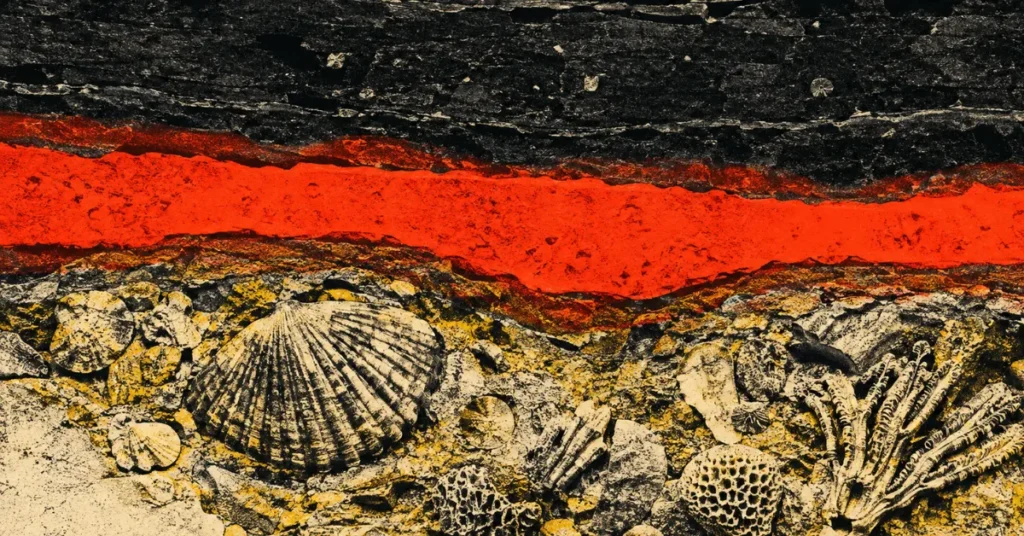
La Gran Mortandad ocurrió hace 251,902 millones de años, y es lo más parecido a un reinicio de todo el planeta que ofrece el registro rocoso. Por encima del límite, las calizas bioclásticas llenas de fragmentos triturados de braquiópodos y detritos de crinoideos dan paso a montículos microbianos dolomitizados y a lutitas negras finas. La diversidad de conodontos cae en picado, y la mayoría de los géneros paleozoicos desaparecen en unos pocos centímetros de sección.
La Gran Mortandad, formalmente la extinción masiva del final del Pérmico, que marca el límite Pérmico-Triásico, eliminó más vida marina y terrestre que cualquier otro evento del Fanerozoico.
¿Cuándo ocurrió la Gran Mortandad?
La sección de Meishan, en el condado de Changxing, provincia de Zhejiang, se encuentra en una cantera abandonada sobre una colina baja al este del pueblo. Es la Sección y Punto de Estratotipo Global oficial de la base del Triásico, ratificada por la Unión Internacional de Ciencias Geológicas en 2001. El límite en sí se define bioestratigráficamente, situado en la primera aparición del conodonto Hindeodus parvus en la capa 27c. Por debajo de ese horizonte, la roca contiene una fauna paleozoica: foraminíferos fusulínidos, braquiópodos prodúctidos, corales rugosos, ammonoideos. Por encima, los supervivientes son una colección mermada de taxones de desastre.
Seis capas de ceniza volcánica de Meishan se han datado mediante espectrometría de masas de ionización térmica con dilución isotópica y abrasión química en circón. Shu-Zhong Shen y sus colegas calibraron la extinción en Meishan entre 251,941 y 251,880 Ma. Seth Burgess, trabajando con Sam Bowring y Shu-Zhong Shen en el MIT, refinó el límite a 251,902 ± 0,024 Ma usando dataciones U-Pb de alta precisión en circones de las capas de ceniza de Meishan. Un estudio complementario correlacionó la cronología de Meishan con circones de los traps siberianos procesados con la misma química y el mismo espectrómetro de masas, eliminando los sesgos sistemáticos que habían lastrado las comparaciones anteriores entre las dataciones Ar-Ar de los basaltos y las dataciones U-Pb de las secciones chinas del límite.
La precisión cierra la brecha causal
Una incertidumbre declarada de ±24 ka en una fecha de 251,9 millones de años es un error relativo del 0,01 %. Es la diferencia entre saber que una extinción ocurrió «hacia el límite Pérmico-Triásico» y saber si ocurrió antes o después de un pulso concreto de emplazamiento de sills (filones capa) a 4.500 kilómetros de distancia, en Siberia. En el tiempo profundo, la causalidad es un problema de geocronología. Si los traps siberianos son posteriores a la extinción, no la causaron. Si son demasiado anteriores, la cadena causal se disuelve en ruido. La cronología de Burgess y Bowring situó el inicio del magmatismo siberiano voluminoso unos 300.000 años antes del comienzo de la extinción marina, con cerca de dos tercios del volumen total de magma emplazado antes y durante el propio intervalo de extinción.
Pangea antes de la catástrofe
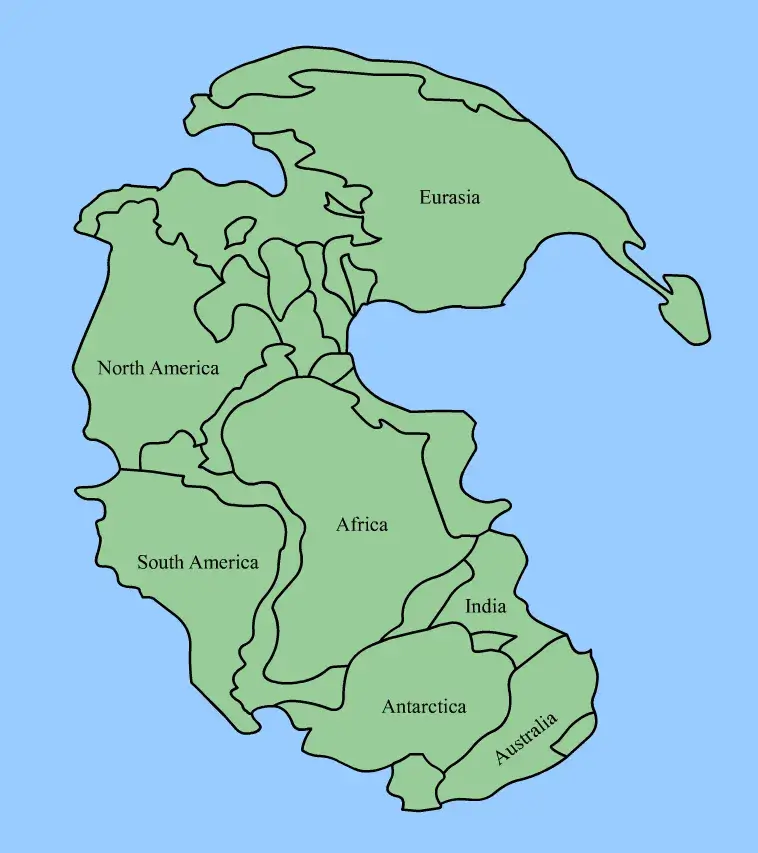
A finales del Pérmico, todos los grandes bloques continentales habían colisionado en un único supercontinente en forma de C. Pangea se extendía de polo a polo, con la cuña del océano de Tetis abriéndose hacia el este hacia Panthalassa, el superocéano global que cubría aproximadamente el 70 % de la superficie del planeta. El interior era un desierto megacontinental. Los monzones estacionales barrían las costas. Los pantanos de carbón de la flora de Cathaysia persistían en las islas del sur de China e Indochina, y los bosques de Glossopteris cubrían las latitudes meridionales de Gondwana.
Los ecosistemas marinos del Pérmico más tardío eran biológicamente ricos pero estructuralmente frágiles. Los arrecifes los construían esponjas calcáreas y asociaciones de corales tabulados y rugosos, con Tubiphytes como destacado componente incrustante y aglutinante. Las plataformas del Tetis, incluidas las plataformas carbonatadas que hoy afloran en los Dolomitas del norte de Italia y en el sur de China, sustentaban comunidades diversas de braquiópodos, briozoos y crinoideos. En tierra, la cuenca del Karoo, en el sur de África, conserva el registro de vertebrados más completo. Los terápsidos dicinodontes Dicynodon y Diictodon pastaban en las llanuras de inundación; gorgonopsios como Inostrancevia y grandes terocéfalos ocupaban el gremio de los depredadores, mientras que los primeros cinodontes, el linaje que con el tiempo daría lugar a los mamíferos, desempeñaban papeles menores en las mismas asociaciones.
El clima del Pérmico tardío ya se estaba calentando. Los registros de isótopos de oxígeno en conodontos de los márgenes del Tetis muestran temperaturas superficiales del mar en ascenso desde el Changhsingiense más tardío hasta el Triásico más temprano. Yadong Sun y sus colegas, en un estudio multiproxy y de modelización paleoclimática de 2024, usaron una duplicación del CO₂ atmosférico, de unas 410 a 860 ppm a lo largo del Pérmico más tardío, como el escenario de forzamiento más coherente con los registros de temperatura de los proxies. La circulación meridional de retorno se debilitó. La célula de Hadley se reorganizó, con sus ramas descendentes desplazándose hacia los polos. El forzamiento climático ya era sustancial en el Changhsingiense más tardío, antes de que el magmatismo siberiano alcanzara su máximo.
Los traps siberianos
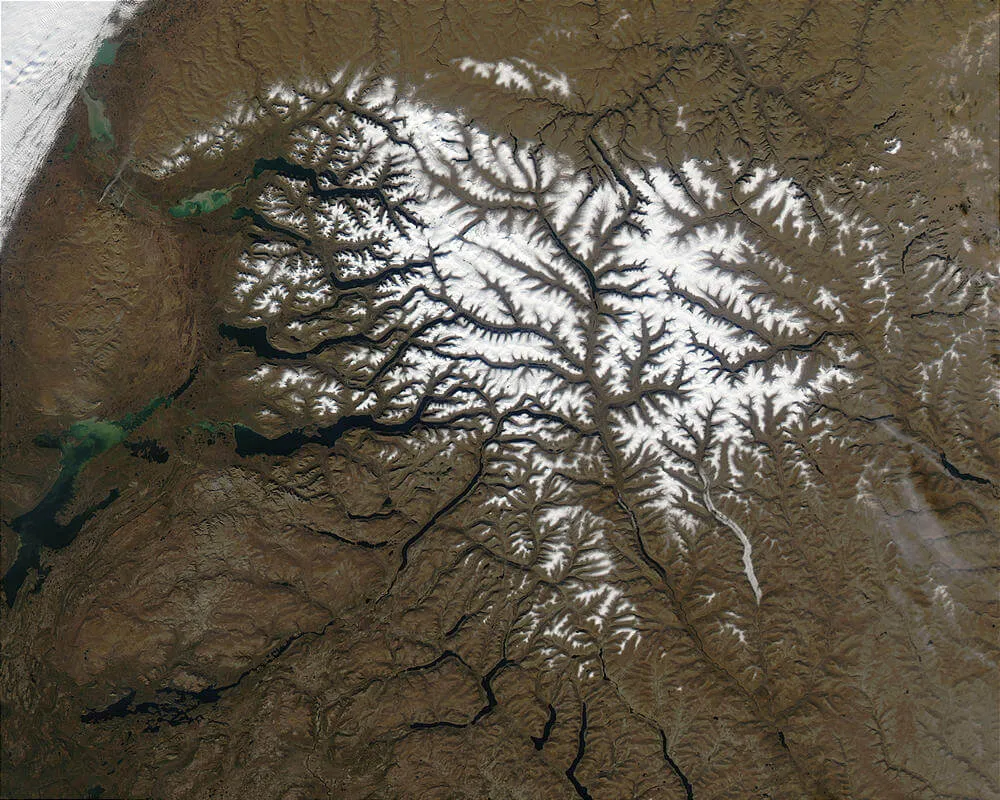
Al norte del círculo polar ártico, más allá de Norilsk, la meseta de Putorana se alza en crestas de basalto gris negruzco cortadas por cascadas que caen cientos de metros por acantilados escalonados. Cada escalón es una colada de lava distinta. La región de Maymecha-Kotuy, al este, expone secciones estratigráficas de más de tres kilómetros de espesor. Juntos, estos afloramientos, junto con los basaltos enterrados de la cuenca de Siberia Occidental detectados por los sondeos de hidrocarburos, definen la gran provincia ígnea de los traps siberianos. La provincia cubría originalmente una superficie estimada de 5–7 millones de km², con afloramientos conservados actuales más cercanos a 2–3 millones de km², y un volumen magmático conservado de unos 3–4 millones de km³.
La erupción se desarrolló en fases. La datación U-Pb de alta precisión de Burgess y Bowring dividió la actividad en fases. Los primeros depósitos piroclásticos y volcanoclásticos, que en algunas zonas acumularon pilas de ceniza de hasta un kilómetro de espesor, comenzaron hacia 252,24 Ma. Siguieron los basaltos de inundación efusivos, con volúmenes prodigiosos de lava emplazados en menos de un millón de años. Lars Augland y sus colegas, trabajando con equipos de campo noruegos y rusos, usaron dataciones U-Pb en circones de complejos intrusivos de Norilsk, Maymecha-Kotuy y Taimyr para demostrar que el pulso principal de magmatismo se extendía, tanto en superficie como en composición, mucho más allá de los traps cartografiados clásicamente, con un emplazamiento sincrónico a lo largo de distancias de más de mil kilómetros.
La hipótesis de la pluma del manto sigue siendo la explicación estándar. Una anomalía térmica profunda ascendió a través del manto, chocó contra la base del cratón siberiano y fundió parcialmente el manto litosférico y astenosférico a escala continental. Los magmas resultantes aprovecharon debilidades corticales preexistentes. Donde alcanzaron la superficie, entraron en erupción como cortinas basálticas desde fisuras de cientos de kilómetros de longitud. Donde se estancaron en la corteza superior, se extendieron lateralmente como sills.
Por qué los traps siberianos fueron tan letales
Por volumen total de magma, los traps siberianos no son excepcionales. La meseta oceánica de Ontong Java los eclipsa; la provincia magmática del Atlántico Central del final del Triásico fue comparable a escala continental. Lo que hace distintivo al evento siberiano es dónde entró en erupción. La provincia se asienta sobre la cuenca de Tunguska: carbones del Carbonífero-Pérmico, evaporitas del Cámbrico y el Devónico, incluidas halita y anhidrita estratificadas, y lutitas ricas en materia orgánica, kilómetros de carbono y azufre esperando a ser cocinados.
Sills, carbón y la bomba de gas de la cuenca de Tunguska
Henrik Svensen y sus colegas de la Universidad de Oslo, a lo largo de la segunda mitad de la década de 2000, cartografiaron más de 6.000 complejos de chimeneas hidrotermales que perforan los sedimentos de la cuenca de Tunguska. Las chimeneas son conductos aproximadamente cilíndricos, de cientos de metros de diámetro y hasta un kilómetro de altura, rellenos de roca encajante brechificada y revestidos de asociaciones minerales hidrotermales y de metamorfismo de contacto. Cada chimenea registra la expulsión explosiva del gas producido cuando un sill en ascenso cocinó las rocas sedimentarias en las que intruyó. La datación U-Pb de circones de una de esas chimeneas situó la expulsión en 252,0 ± 0,4 Ma, coincidiendo con la extinción marina de Meishan.
Calentar los carbones de la cuenca de Tunguska a temperaturas magmáticas libera metano y CO₂ a escalas enormes. Calentar las evaporitas de halita y anhidrita subyacentes hace algo más peculiar. Los experimentos de laboratorio del grupo de Svensen con sal de roca petrolífera de Siberia demostraron que, cuando las evaporitas naturales se calientan a unos 275 °C, liberan cloruro de metilo y bromuro de metilo. Son halocarbonos con un potencial de destrucción del ozono comparable o superior al de los CFC industriales.
Seth Burgess revisó la cronología del magmatismo en 2017 y propuso una hipótesis más afilada. La fase más temprana del magmatismo siberiano, dominada por lavas superficiales, precedió a la extinción en varios cientos de miles de años y no desestabilizó, por sí sola, la biosfera. La crisis empezó cuando cambió la fontanería del magma. Hacia el momento del inicio de la extinción, el estilo de emplazamiento dominante pasó bruscamente de lavas de inundación extrusivas a sills intrusivos. Los sills, a diferencia de las coladas superficiales, intruyen directamente en las rocas sedimentarias encajantes. Cada sill se convierte en una aureola térmica gigante. Burgess, James Muirhead y Bowring sostuvieron que este pulso inicial de sills de gran extensión lateral cocinó volúmenes inmensos de sedimento hasta entonces intacto y fértil en volátiles, liberando los volátiles de carbono y azufre que desencadenaron la mortandad.
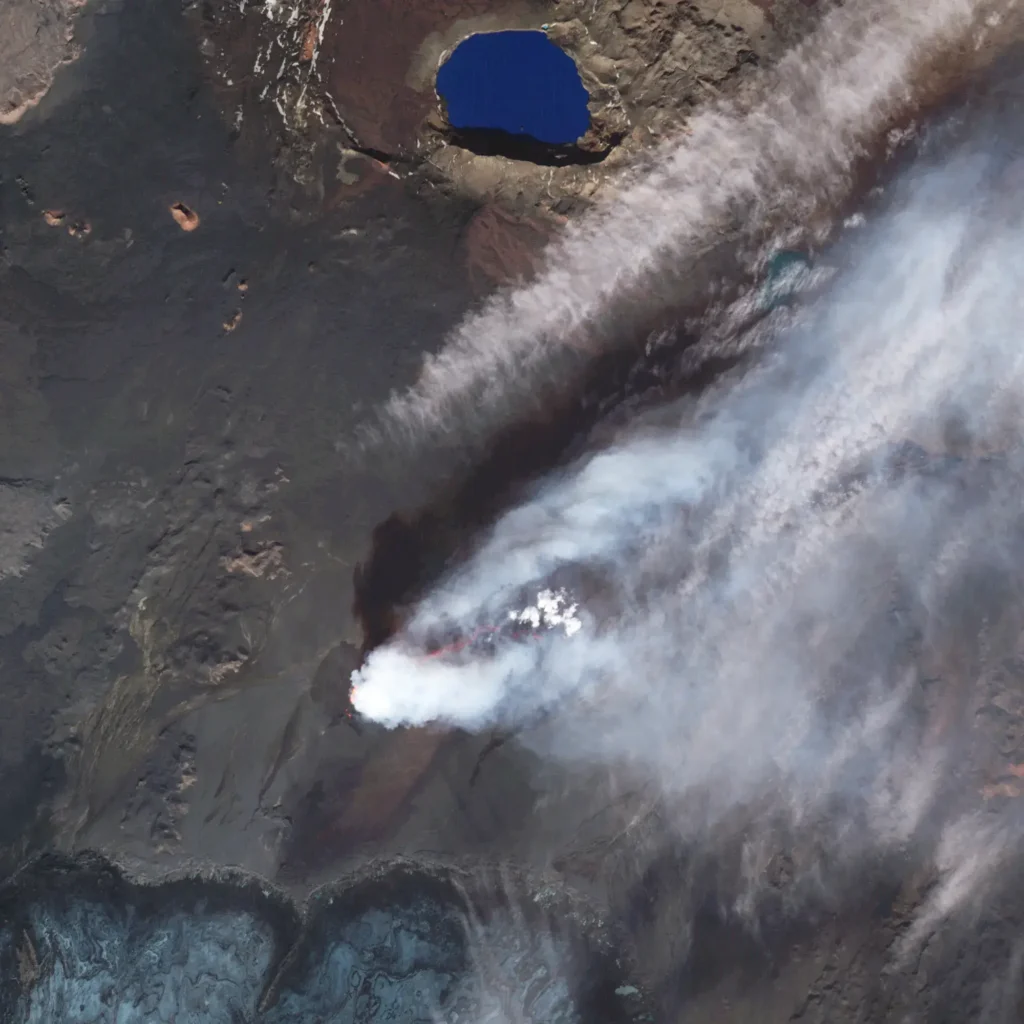
La geoquímica ha corroborado desde entonces este cuadro. Ying Cui y sus colaboradores usaron registros de isótopos de carbono en roca total y un modelo del sistema terrestre para estimar la magnitud y la tasa de emisión de carbono a través del límite. Su escenario de mejor ajuste requería una liberación del orden de decenas de miles de gigatoneladas de carbono a tasas máximas de varias Gt C por año, con una firma isotópica coherente con una fuente predominantemente volcánica y de metamorfismo de contacto, más que con un desencadenante de clatratos de metano. Las anomalías de mercurio en los sedimentos marinos cuentan la misma historia. Jun Shen y sus colegas midieron las concentraciones y los isótopos de mercurio a través del límite Pérmico-Triásico en diez secciones marinas repartidas por el hemisferio norte y el Tetis. Encontraron picos de Hg coincidentes con la extinción en las secciones de aguas someras, mientras que las secciones de aguas profundas registraban anomalías de Hg decenas de miles de años antes, lo que indica que el vulcanismo ya estaba cargando la atmósfera antes de que el colapso biótico se volviera inequívoco en las asociaciones de plataforma.
Stephen Grasby y sus colegas encontraron una línea de evidencia aún más inquietante en los sedimentos de la cuenca de Sverdrup, en el Alto Ártico canadiense: capas de esférulas carbonosas indistinguibles al microscopio de las cenizas volantes de carbón modernas, el residuo del carbón pulverizado que se quema a altas temperaturas. Su interpretación fue que las erupciones térmicas a través de los carbones de Tunguska elevaron ceniza a escala global, dispersando partículas tóxicas sobre los océanos y aportando más metales a las aguas superficiales exactamente cuando la biosfera marina empezaba a fallar.
Cómo un mega El Niño mató los océanos
El forzamiento por CO₂ por sí solo no explica la escala de la mortandad. El mecanismo que vincula el flujo de carbono con la pérdida del 81 % de las especies marinas es climático y dinámico, y actúa a través de la circulación oceánica, la célula de Hadley y la variabilidad del Pacífico tropical. Un estudio de 2024 en Science de Yadong Sun, Alexander Farnsworth, Michael Joachimski, Paul Wignall, Leopold Krystyn, David Bond, Domenico Ravidà y Paul Valdes propuso la que quizá sea la reconstrucción más convincente hasta la fecha. Su enfoque integrado de isótopos y modelización paleoclimática mostró que, a medida que el CO₂ se duplicaba en el Pérmico más tardío, el gradiente de temperatura entre el ecuador y los polos se desplomó, la circulación meridional de retorno se debilitó, la célula de Hadley se contrajo y El Niño-Oscilación del Sur se volvió patológico.
En su reconstrucción, los eventos individuales duraban del orden de una década, mucho más que cualquier cosa del registro moderno del ENSO, con anomalías de la temperatura superficial del mar en el Pacífico tropical lo bastante grandes como para redibujar el mapa de lluvias de Pangea. Los intervalos de sequía se prolongaban demasiado para que las especies arbóreas sobrevivieran entre fases húmedas. En los océanos, la ausencia de gradientes meridionales y la ralentización de la circulación de retorno privaron de oxígeno a las aguas profundas mientras empujaban las temperaturas superficiales más allá de las tolerancias térmicas del plancton. La retroalimentación se acumuló: los bosques moribundos dejaron de secuestrar carbono, dejando más CO₂ en la atmósfera; más CO₂ producía oscilaciones del ENSO aún más intensas; oscilaciones del ENSO más intensas mataban más biomasa.
La extinción del final del Pérmico en el ámbito marino no se distribuyó uniformemente entre latitudes. Los taxones tropicales sufrieron, pero la severidad de la extinción fue mayor en latitudes medias y altas para muchos grupos marinos. Justin Penn, Curtis Deutsch, Jonathan Payne y Erik Sperling, en un artículo de 2018 en Science, modelizaron el océano del Pérmico-Triásico usando un marco acoplado de clima y ecofisiología. Calcularon un índice metabólico para taxones animales representativos: el cociente entre el suministro y la demanda de oxígeno de un organismo dado a una temperatura dada. Su modelo reprodujo la geografía de extinción observada porque las latitudes altas perdieron sus refugios fríos y ricos en oxígeno. Las especies tropicales podían desplazarse hacia los polos a medida que los trópicos se calentaban; a las especies de latitudes altas no les quedaba adónde ir.
Anoxia en profundidad, hipercapnia en superficie
Los registros de framboides de pirita, los isótopos de uranio y la geoquímica de los metales traza sensibles al estado redox convergen todos en un único cuadro para el océano del Pérmico más tardío. Las aguas de fondo de vastas áreas de plataforma del Tetis y de Panthalassa se volvieron anóxicas o incluso euxínicas, con sulfuro de hidrógeno libre. La quimioclina se hizo más somera. La euxinia de la zona fótica, registrada por biomarcadores como el isorenierateno derivado de las bacterias verdes del azufre, alcanzó episódicamente el océano superficial en algunas secciones. La combinación de calentamiento, desoxigenación y acumulación de sulfuro fue una tenaza fisiológica.
La curva de mortalidad marina: anoxia, hipercapnia, acidificación
La cifra principal de la extinción ha cambiado en las dos últimas décadas. Las síntesis más antiguas, incluida la tan citada pérdida del 96 % de las especies marinas, se basaban en análisis de rarefacción con sesgos de muestreo sustanciales. Las estimaciones de consenso más recientes, incluidas las extraídas de la Paleobiology Database y de las síntesis regionales de Steven Stanley y Shu-Zhong Shen, sitúan la pérdida de especies marinas en aproximadamente el 81 %, con una pérdida a nivel de género más cercana al 56 %. El marco de la «Gran Mortandad» sigue siendo exacto; el porcentaje preciso cambia a medida que mejoran las bases de datos de fósiles.
La curva de mortalidad se distribuye de forma desigual entre los grupos taxonómicos. Los organismos fuertemente calcificadores con una capacidad fisiológica de amortiguación limitada fueron los que más sufrieron. Los corales rugosos y tabulados se extinguieron por completo. Los foraminíferos fusulínidos y los trilobites desaparecieron. Los braquiópodos articulados, que habían dominado las comunidades bentónicas de plataforma durante 250 millones de años, perdieron la mayor parte de su diversidad. Los moluscos salieron adelante con pérdidas graves, pero con suficientes supervivientes para sembrar el Mesozoico. Los conodontos, los ammonoideos y un puñado de linajes de foraminíferos proporcionaron la columna vertebral bioestratigráfica para correlacionar las secciones del Triásico más temprano.
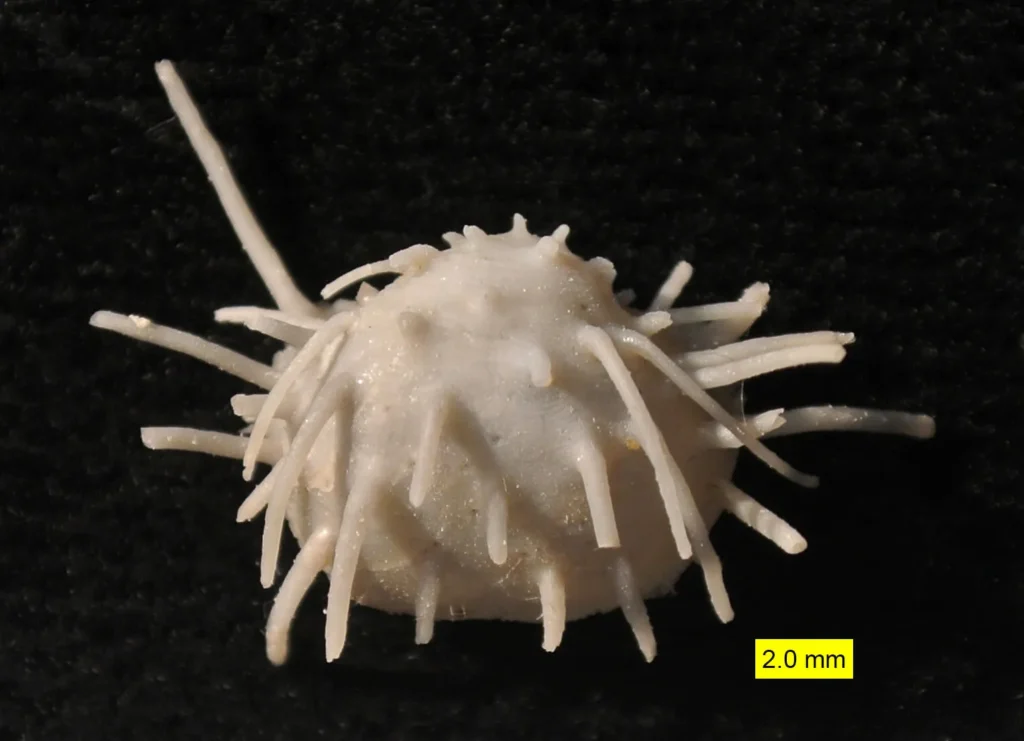
Hana Jurikova y sus colegas del GEOMAR de Kiel cuantificaron la acidificación oceánica a través del límite usando isótopos de boro en conchas de braquiópodos del Pérmico tardío de los Alpes meridionales. Las conchas, depositadas en la plataforma del Tetis de lo que hoy es el norte de Italia, registraron un descenso sustancial del pH del agua de mar coincidente con el inicio de la extinción masiva. Combinado con datos de isótopos de carbono e integrado en un modelo geoquímico, el registro de boro resolvió al menos dos pulsos de acidificación distintos. El pulso inicial, ligado a la rápida liberación de carbono por las intrusiones de sills siberianos, fue lo bastante brusco como para hacer caer en picado el estado de saturación de carbonato de las aguas superficiales en unos pocos miles de años.
Para los animales con concha, la acidificación significó costes metabólicos elevados de biomineralización. Para los animales que ya lidiaban con temperaturas elevadas y un oxígeno reducido, la carga adicional de la hipercapnia (CO₂ elevado en sangre) empujó muchas fisiologías más allá de sus tolerancias. Jonathan Payne y Lee Kump habían sostenido años antes que el patrón de selectividad de la extinción del final del Pérmico en el ámbito marino seguía de cerca la capacidad fisiológica de los taxones para amortiguar su química ácido-base interna. Foster y sus colegas, en un estudio paleobiológico de 2022, aplicaron aprendizaje automático a un gran conjunto de datos de fósiles marinos y encontraron que los rasgos ecológicos asociados a limitaciones metabólicas y respiratorias predecían el riesgo de extinción mejor que la afiliación taxonómica.
Benjamin Black, en colaboración con Linda Elkins-Tanton, Erik Hauri y Steven Brown, examinó las razones isotópicas del azufre en inclusiones fundidas atrapadas en minerales de los traps siberianos para estimar las emisiones de azufre del sistema volcánico. Concluyeron que los magmas transportaban bastante más azufre del que suelen llevar los basaltos derivados del manto, con firmas isotópicas que apuntaban al sulfato derivado de evaporitas como fuente adicional. Cuando ese azufre se inyectó en la estratosfera, formó aerosoles de sulfato que dispersaron la luz solar y produjeron episodios de enfriamiento regional. Cuando volvió a la superficie, produjo precipitaciones ácidas en todo el hemisferio norte. Black, Jean-François Lamarque y sus colegas modelizaron la química atmosférica de la desgasificación pulsátil de los traps siberianos y encontraron que la lluvia simulada alcanzaba valores de pH comparables a los del jugo de limón sin diluir sobre la región de la erupción, con episodios de destrucción global del ozono impulsados por volátiles con halógenos.
El colapso terrestre y la Tierra de Lystrosaurus
En tierra, la extinción del final del Pérmico se lee con la mayor claridad en la cuenca del Karoo, en Sudáfrica. El Grupo Beaufort del Karoo conserva una sucesión de llanura de inundación casi continua desde el Pérmico tardío hasta el Triásico temprano. La bioestratigrafía de vertebrados divide este intervalo en zonas de asociación que llevan el nombre de sus géneros característicos. La zona de asociación de Daptocephalus, de edad changhsingiense tardía, está dominada por grandes dicinodontes y un gremio diverso de depredadores gorgonopsios. Por encima, en la zona de asociación de Lystrosaurus, la fauna ha quedado reducida a un puñado de taxones, con el dicinodonte del tamaño de un cerdo Lystrosaurus representando hasta el 95 % de los especímenes identificables en algunos lechos de huesos.
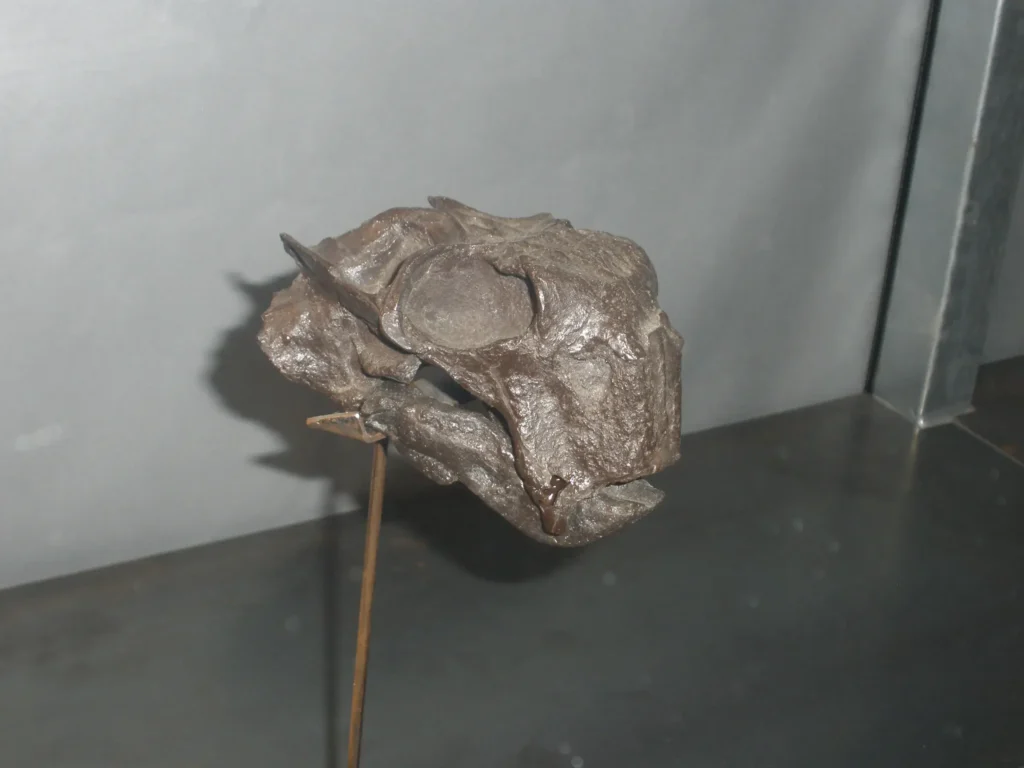
Lystrosaurus es el taxón de desastre por excelencia. Excavador, oportunista y fisiológicamente tolerante al oxígeno bajo y al CO₂ elevado, se extendió por Pangea en el Triásico más temprano con una eficiencia extraordinaria. Sus fósiles se han recuperado en la Antártida, la India, China, la Rusia europea y Sudáfrica, lo que marca una distribución casi cosmopolita. Los especímenes antárticos, recuperados por el equipo de Edwin Colbert en Coalsack Bluff en 1969, se convirtieron en una de las confirmaciones paleontológicas más citadas de la deriva continental. Las llanuras de inundación del Karoo posteriores a la extinción son esencialmente un monocultivo de Lystrosaurus, poblado por unos pocos anfibios temnospóndilos pequeños y por los primeros terocéfalos y cinodontes supervivientes que con el tiempo se diversificarían en los linajes de sinápsidos del Mesozoico.
El registro vegetal tiene más matices. Cindy Looy y sus colegas documentaron el colapso de los bosques dominados por Glossopteris del sur de Pangea y de las selvas de Cathaysia del cinturón ecuatorial. Las asociaciones palinológicas a través del límite muestran la sustitución abrupta de las gimnospermas productoras de polen por esporas de licófitos y helechos, el clásico «pico de helechos» que marca los paisajes posteriores a una perturbación. La erosión del suelo aumentó notablemente, registrada como paleosuelos ricos en caolinita y depósitos aluviales de grano grueso inusuales en múltiples cuencas. La deposición de carbón cesó esencialmente en todo el mundo durante varios millones de años: el «hiato de carbón del Triásico Temprano».
¿Ocurrieron al mismo tiempo las extinciones en tierra y en el mar?
Uno de los cambios más importantes en nuestra comprensión de la Gran Mortandad vino de un artículo de 2024 de Qiong Wu y sus colegas en Science Advances. Trabajando en secciones terrestres del Pérmico-Triásico del sur y del norte de China, aplicaron datación U-Pb de alta precisión en circones a capas de ceniza ligadas directamente a horizontes fosilíferos. Su resultado: la principal extinción terrestre del final del Pérmico en los paleotrópicos fue posterior al inicio de la extinción marina en decenas de miles de años. La suposición clásica de un colapso global sincrónico, con la tierra y el mar expirando juntos, no se sostiene en el cinturón ecuatorial.
Esa diacronía encaja con el modelo del mega El Niño. Sun y sus colegas sostuvieron que la firma del mega El Niño, con sus plumas de calor tropicales y su aridificación continental, mató a las plantas y los animales terrestres de forma progresiva a medida que los intervalos de sequía se alargaban más allá de los umbrales de supervivencia. Los ecosistemas marinos estuvieron inicialmente amortiguados por la inercia térmica del océano y por los reservorios fríos profundos, y sucumbieron solo cuando el calentamiento, la desoxigenación y la acidificación se fueron acumulando a lo largo de las decenas de miles de años siguientes. El registro de vertebrados del Karoo, estudiado por Roger Smith, Jennifer Botha-Brink y Pia Viglietti, muestra un colapso escalonado en lugar de un único horizonte, con los depredadores gorgonopsios dominantes desapareciendo antes que su base de presas de dicinodontes.
¿Qué causó la extinción del final del Pérmico?
La evidencia converge desde seis direcciones independientes. Las dataciones U-Pb de los sills siberianos y de las capas de ceniza de Meishan, obtenidas en el mismo laboratorio, sitúan la intrusión inicial de sills unos 300 ka antes del inicio de la extinción marina, con el estilo dominante de emplazamiento del magma pasando de lavas extrusivas a sills intrusivos en el propio límite. Los isótopos de boro de braquiópodos del margen del Tetis registran pulsos de acidificación sincrónicos con ese cambio de emplazamiento. Las anomalías de mercurio en sedimentos marinos de todo el mundo se disparan en el mismo horizonte. Las excursiones de isótopos de carbono, modelizadas por Cui y sus colegas, requieren una liberación de unas 36.000 Gt de carbono con una firma isotópica volcánica a tasas cercanas a 5 Gt C por año. Los isótopos de azufre de las inclusiones fundidas siberianas muestran una fuerte carga de sulfato derivado de evaporitas. Los residuos de cenizas volantes de carbón en los sedimentos del Ártico canadiense registran la combustión de los carbones de Tunguska a escala continental.
Cada línea de evidencia se apoya en las demás. Una pluma del manto asciende bajo el cratón siberiano. Los sills intruyen un paquete de sedimentos cargado de carbón, evaporitas y lutitas orgánicas. La atmósfera se carga de CO₂, metano, haluros de metilo y aerosoles de sulfato. Siguen el calentamiento, la acidificación y una dinámica desbocada del ENSO. Las comunidades marinas y terrestres colapsan.
A modo de comparación, las emisiones antropogénicas modernas de carbono rondan las 10 Gt C por año, el doble de la tasa máxima que Cui y sus colegas estimaron para el final del Pérmico. El presupuesto acumulado total de la desgasificación de los traps siberianos supera cualquier cosa que los humanos pudieran emitir de forma plausible quemando todas las reservas conocidas de combustibles fósiles. Las emisiones humanas no reproducirán el presupuesto de los traps siberianos. De lo que advierte el registro rocoso es de la tasa, de las retroalimentaciones que se activan cuando el sistema del carbono de un planeta se perturba más deprisa de lo que sus amortiguadores pueden responder.
La recuperación, y por qué tardó 10 millones de años
El océano del Triásico más temprano era un lugar extraño. Las plataformas carbonatadas del sur de China y de Irán están dominadas por microbialitas: fábricas carbonatadas laminadas y grumosas producidas por tapetes de cianobacterias. Son típicas de los mares precámbricos, antes de que los animales pastadores mantuvieran reprimidas las comunidades microbianas en las plataformas someras. Inmediatamente después de la extinción, desaparecidos los pastadores y los constructores de arrecifes, las microbialitas volvieron a ser la fábrica dominante de carbonato marino. Las asociaciones de bivalvos eran monótonas, dominadas por unos pocos géneros oportunistas como Claraia y Eumorphotis. La diversidad de ammonoideos, tras colapsar a través del límite, se recuperó numéricamente en un millón de años, pero siguió siendo ecológicamente estrecha durante mucho más tiempo.
Las temperaturas superficiales del océano, reconstruidas a partir de los isótopos de oxígeno del apatito de conodontos por Joachimski y otros, se mantuvieron extraordinariamente altas durante todo el Triásico temprano. Las temperaturas superficiales del mar en los trópicos se acercaron a los 40 °C en el Smithiense (Sun et al. 2012, Science), condiciones que excluyeron por completo de los océanos ecuatoriales a la mayoría de los peces grandes y de los tetrápodos. La «zona muerta tropical» del Triásico Temprano duró varios millones de años antes de que las temperaturas se moderaran lo suficiente como para permitir que comunidades marinas diversas volvieran a ocupar las latitudes bajas.
Los registros de mercurio compilados por Shen y sus colegas en múltiples secciones muestran que el magmatismo de los traps siberianos continuó en pulsos hasta bien entrado el Triásico Temprano, con al menos dos eventos distintos posteriores a la extinción. Cada pulso parece haber prolongado o reiniciado la recuperación. La anoxia volvió. Las curvas de isótopos de carbono oscilaron violentamente durante el Triásico temprano, lo que indica una perturbación sostenida del ciclo global del carbono. La cronología de Burgess y Bowring muestra que el vulcanismo superficial continuó durante al menos otros 500.000 años después de que terminara la extinción, y el volumen de magma posterior a la extinción rivalizó con el anterior.
Los ecosistemas de arrecife complejos no reaparecieron hasta el Triásico Medio, unos 7 a 10 millones de años después del límite Pérmico-Triásico, con el auge de los corales escleractinios que sustituyeron al extinto gremio de rugosos y tabulados. El intervalo de recuperación representa el hiato más largo de este tipo en el Fanerozoico, más largo que la recuperación de cualquier otra extinción masiva. La recuperación tras el evento de Chicxulub del final del Cretácico, en comparación, se completó en gran medida en unos pocos millones de años para la mayoría de los grupos marinos y terrestres.
Lo que el límite Pérmico-Triásico nos dice sobre el clima actual
El límite Pérmico-Triásico aparece ahora en capítulos del IPCC sobre la respuesta de los ecosistemas oceánicos. Los científicos del clima lo leen como el ejemplo más limpio del registro rocoso de un planeta llevado al colapso por una perturbación del ciclo del carbono: CO₂ alto, oxígeno bajo, pH bajo y calor.
Penn, Deutsch, Payne y Sperling enmarcaron su trabajo sobre la hipoxia dependiente de la temperatura frente a las tendencias modernas de desoxigenación oceánica. Los investigadores comparan directamente el registro de isótopos de boro de Jurikova en braquiópodos del Tetis con las reconstrucciones modernas del pH a partir de isótopos de boro en esqueletos de coral. Las tasas de emisión de carbono de Cui aparecen en la literatura sobre políticas junto a las cifras contemporáneas de combustibles fósiles.
Los números no se trasladan limpiamente al presente. Los traps siberianos liberaron su carbono a lo largo de cientos de miles de años, con un presupuesto acumulado al que ningún escenario humano de combustibles fósiles podría acercarse. Pangea ya no existe. Las masas de hielo polares que amortiguan el calentamiento moderno no existían. Ninguna pluma del manto ha aflorado bajo una cuenca de carbón y evaporitas en nuestro hemisferio.
Lo que sí se traslada es la tasa. Las emisiones antropogénicas avanzan a aproximadamente el doble de la tasa máxima que Cui estimó para el evento siberiano. El registro del Pérmico-Triásico muestra lo que ocurre cuando la química del océano se perturba más deprisa de lo que sus amortiguadores pueden responder.
Lo que todavía no sabemos sobre la extinción del Pérmico-Triásico
Algunas piezas de la historia de la extinción del final del Pérmico siguen sin resolverse. El papel de la desestabilización de los clatratos de metano se ha discutido en un sentido y en otro durante dos décadas; el análisis isotópico de Cui desfavorece un aporte importante de clatratos, aunque no descarta una contribución. La importancia relativa de la anoxia marina, el envenenamiento por sulfuro de hidrógeno y el calentamiento como mecanismos de mortandad marina sigue debatiéndose taxón por taxón. La extinción terrestre en las latitudes altas del sur, en lugares como la cuenca de Sídney, en Australia, y la cuenca de Bowen, parece haber comenzado incluso antes que los eventos del Karoo y de China, lo que sugiere que el colapso terrestre global fue diacrónico en ambas direcciones.
Las campañas de campo continúan. Se están midiendo nuevas secciones del límite Pérmico-Triásico en el Ártico canadiense, en Irán, en Turquía, en Omán y en las secciones panthalásicas de océano profundo conservadas como bloques acrecionados en Japón. Cada una añade una dimensión regional a la historia global. La delgada capa de arcilla de Meishan sigue siendo el espécimen tipo, la piedra de Rosetta con la que se calibra todo lo demás. Pero ya no es la única roca que importa.
El límite en Meishan es una delgada banda pálida de ceniza volcánica alterada, el tipo de cosa junto a la que pasarías en una ladera sin reparar en ella. Registra la conversión de una biosfera paleozoica de trilobites, plataformas dominadas por braquiópodos y bosques de Glossopteris en un escenario mesozoico despoblado en el que Lystrosaurus hozaba por las llanuras de inundación y las microbialitas crecían sobre los restos de los arrecifes. La fase de mortandad duró del orden de 60.000 años. La recuperación tardó diez millones.
Preguntas frecuentes
¿Cuándo ocurrió la Gran Mortandad? Hace 251,902 ± 0,024 millones de años, en el límite entre los periodos Pérmico y Triásico.
¿Qué causó la extinción masiva del final del Pérmico? La gran provincia ígnea de los traps siberianos, en particular la intrusión de sills de magma en los carbones, las evaporitas y las lutitas ricas en materia orgánica de la cuenca de Tunguska, que liberó unas 36.000 gigatoneladas de carbono junto con azufre, halocarbonos y metales tóxicos.
¿Cuántas especies se extinguieron? Aproximadamente el 81 % de las especies marinas y el 56 % de los géneros marinos. Las pérdidas terrestres son más difíciles de cuantificar, pero fueron comparablemente graves.
¿Cuánto duró la extinción? La fase de mortandad duró unos 60.000 años. El desencadenante magmático se extendió durante unos 300.000 años antes de que comenzara la extinción marina. La recuperación completa de los ecosistemas requirió de 7 a 10 millones de años.
Referencias
- Burgess, S.D. & Bowring, S.A. (2015). High-precision geochronology confirms voluminous magmatism before, during, and after Earth’s most severe extinction. Science Advances, 1(7): e1500470. https://doi.org/10.1126/sciadv.1500470
- Burgess, S.D., Muirhead, J.D. & Bowring, S.A. (2017). Initial pulse of Siberian Traps sills as the trigger of the end-Permian mass extinction. Nature Communications, 8: 164. https://doi.org/10.1038/s41467-017-00083-9
- Sun, Y., Farnsworth, A., Joachimski, M.M., Wignall, P.B., Krystyn, L., Bond, D.P.G., Ravidà, D.C.G. & Valdes, P.J. (2024). Mega El Niño instigated the end-Permian mass extinction. Science, 385(6714): 1189–1195. https://doi.org/10.1126/science.ado2030
- Wu, Q., Zhang, H., Ramezani, J., Zhang, F.-F., Erwin, D.H., Feng, Z., Shao, L.-Y., Cai, Y.-F., Zhang, S.-H., Xu, Y.-G. & Shen, S.-Z. (2024). The terrestrial end-Permian mass extinction in the paleotropics postdates the marine extinction. Science Advances, 10(5): eadi7284. https://doi.org/10.1126/sciadv.adi7284
- Shen, S.-Z., Crowley, J.L., Wang, Y., Bowring, S.A., Erwin, D.H., Sadler, P.M., Cao, C.-Q., Rothman, D.H., Henderson, C.M., Ramezani, J., Zhang, H., Shen, Y., Wang, X.-D., Wang, W., Mu, L., Li, W.-Z., Tang, Y.-G., Liu, X.-L., Liu, L.-J., Zeng, Y., Jiang, Y.-F. & Jin, Y.-G. (2011). Calibrating the end-Permian mass extinction. Science, 334(6061): 1367–1372. https://doi.org/10.1126/science.1213454
- Bowring, S.A., Erwin, D.H., Jin, Y.G., Martin, M.W., Davidek, K. & Wang, W. (1998). U/Pb zircon geochronology and tempo of the end-Permian mass extinction. Science, 280(5366): 1039–1045. https://doi.org/10.1126/science.280.5366.1039
- Cui, Y., Li, M., van Soelen, E.E., Peterse, F. & Kürschner, W.M. (2021). Massive and rapid predominantly volcanic CO₂ emission during the end-Permian mass extinction. Proceedings of the National Academy of Sciences, 118(37): e2014701118. https://doi.org/10.1073/pnas.2014701118
- Penn, J.L., Deutsch, C., Payne, J.L. & Sperling, E.A. (2018). Temperature-dependent hypoxia explains biogeography and severity of end-Permian marine mass extinction. Science, 362(6419): eaat1327. https://doi.org/10.1126/science.aat1327
- Black, B.A., Lamarque, J.-F., Shields, C.A., Elkins-Tanton, L.T. & Kiehl, J.T. (2014). Acid rain and ozone depletion from pulsed Siberian Traps magmatism. Geology, 42(1): 67–70. https://doi.org/10.1130/G34875.1
- Svensen, H., Planke, S., Polozov, A.G., Schmidbauer, N., Corfu, F., Podladchikov, Y.Y. & Jamtveit, B. (2009). Siberian gas venting and the end-Permian environmental crisis. Earth and Planetary Science Letters, 277(3–4): 490–500. https://doi.org/10.1016/j.epsl.2008.11.015
- Grasby, S.E., Sanei, H. & Beauchamp, B. (2011). Catastrophic dispersion of coal fly ash into oceans during the latest Permian extinction. Nature Geoscience, 4: 104–107. https://doi.org/10.1038/ngeo1069
- Shen, J., Chen, J., Algeo, T.J., Yuan, S., Feng, Q., Yu, J., Zhou, L., O’Connell, B. & Planavsky, N.J. (2019). Evidence for a prolonged Permian-Triassic extinction interval from global marine mercury records. Nature Communications, 10: 1563. https://doi.org/10.1038/s41467-019-09620-0
- Jurikova, H., Gutjahr, M., Wallmann, K., Flögel, S., Liebetrau, V., Posenato, R., Angiolini, L., Garbelli, C., Brand, U., Wiedenbeck, M. & Eisenhauer, A. (2020). Permian–Triassic mass extinction pulses driven by major marine carbon cycle perturbations. Nature Geoscience, 13: 745–750. https://doi.org/10.1038/s41561-020-00646-4
- Black, B.A., Hauri, E.H., Elkins-Tanton, L.T. & Brown, S.M. (2014). Sulfur isotopic evidence for sources of volatiles in Siberian Traps magmas. Earth and Planetary Science Letters, 394: 58–69. https://doi.org/10.1016/j.epsl.2014.02.057
- Erwin, D.H. (2006). Extinction: How Life on Earth Nearly Ended 250 Million Years Ago. Princeton University Press, Princeton, NJ.
- Foster, W.J., Ayzel, G., Münchmeyer, J., Rettelbach, T., Kitzmann, N.H., Isson, T.T., Mutti, M. & Aberhan, M. (2022). Machine learning identifies ecological selectivity patterns across the end-Permian mass extinction. Paleobiology, 48(3): 357–371. https://doi.org/10.1017/pab.2022.1
- Augland, L.E., Ryabov, V.V., Vernikovsky, V.A., Planke, S., Polozov, A.G., Callegaro, S., Jerram, D.A. & Svensen, H.H. (2019). The main pulse of the Siberian Traps expanded in size and composition. Scientific Reports, 9: 18723. https://doi.org/10.1038/s41598-019-54023-2